您好,欢迎來到青(qing)莲百奥!
植物會向周围(wei)環境释放化感(gan)物質,並导致(zhi)鄰近植物之間相互抑製或促進,从而影響着田間作物與雜草的竞争動態。醌類作為關键(jian)次級代谢產物廣泛存在於自然界,並且在非寄生植物(wu)的免疫和生长中发挥重要作(zuo)用。醌感知通常涉及蛋白質(zhi)的翻(fan)译后修飾,特別(bie)是通過半胱氨(an)酸氧化。然而,醌類誘(you)导的半胱氨酸修飾以及調控之間的關系尚未完全阐明。
今年(nian)9月24日,由湖南省農業科學院柏连阳院士(shi)團隊(dui)王立峰課題組主导,北京青莲百奥參與的研究论(lun)文“The CANNOT RESPOND TO DMBQ 1-GLUTAREDOXIN C1 module regulates Arabidopsis root growth via quinone-induced oxidation”已上線(xian)Plant Physiol (IF=6.9)雜志。本文通過檢測醌類化感物質(zhi)2,6-dimethoxy-1,4-benzoquinone(DMBQ)處理后的胞内ROS水平,結合修飾蛋(dan)白質組學(xue),系統解析了醌類(lei)化感物(wu)質DMBQ通過CANNOT RESPOND TO DMBQ 1-GLUTAREDOXIN C1(CARD1-GRXC1)氧化還原信號模块(kuai)調控植物根系(xi)生长的分子機製。该研究為理解DMBQ誘导的氧化還(hai)原信號通路和DMBQ-CARD1-GRXC1信號通路響應擬南芥氧化還原改(gai)變提供了分(fen)子基礎。
北京青莲百奥生物科技有限公司(si)為文章提供了(le)氧化還原修飾組學服務。
研究結果
一、DMBQ激发擬南芥根系的氧化應(ying)激(ji)響應
為了探究非寄生植物對DMBQ的響應及其對ROS產生的(de)影響,研究團隊分別用(yong)20 μM DMBQ處理野生(sheng)型擬南(nan)芥(Col-0)和card1功能(neng)缺失突變體的幼苗根系,发現DMBQ或H2O2處理均能顯著提高Col-0根系胞内(nei)ROS水平,但DMBQ未能誘(you)导card1突變體產生ROS。同時(shi),DMBQ或H2O2處理可(ke)抑製Col-0根系生长,而對card1突變體无此(ci)效應。結果說明DMBQ通過CARD1依赖機製抑製根系生长。随后檢測了NADPH氧化酶(mei)RBOHD突變體,經DMBQ處理后也未出現根(gen)伸(shen)长抑製現象,表明(ming)ROS是DMBQ抑製根系生长所必需的。綜上所述,DMBQ-CARD1信號通路通過誘导(dao)ROS积累進而抑製(zhi)根系生长。
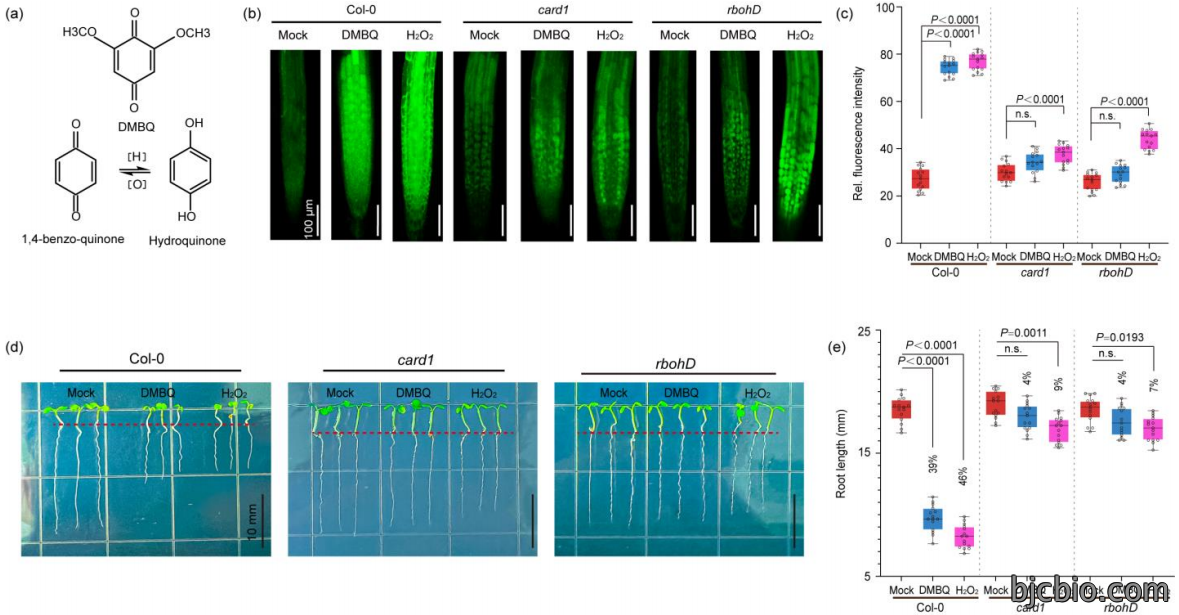
圖1. DMBQ-CARD1信號通路通(tong)過誘导活性氧爆发抑製(zhi)擬南芥根系生长
二、擬南芥中DMBQ誘导的半胱氨酸氧化還原修飾(shi)組全景分(fen)析
為了探究(jiu)DMBQ對擬南芥氧化還原状(zhuang)態的影響(xiang),研究團(tuan)隊(dui)對生(sheng)长(zhang)一周的Col-0幼(you)苗進(jin)行了20 μM DMBQ處理(li),随后(hou)與對照組樣本進行了(le)氧化還原修飾組學分析。差异分析发現(xian)有733個(ge)受DMBQ氧化調控的(de)蛋白,包括多個典型氧(yang)化(hua)敏感蛋白。其中CINNAMATE 4-HYDROXYLASE(C242位點)和(he)細胞色素P450 81F4(C87位點)對DMBQ處理(li)表現突出,其-SH和-SOH形式发生顯著變(bian)化(hua)。最終定義了包含(han)1,870個蛋(dan)白的(de)DMBQ敏感(gan)性擬南芥(jie)氧化還原組,其中25.7%的蛋白呈現多位(wei)點氧化(hua)還原修飾。表明(ming)DMBQ處理顯著改變了擬南芥蛋(dan)白質組的(de)氧化還原状態。
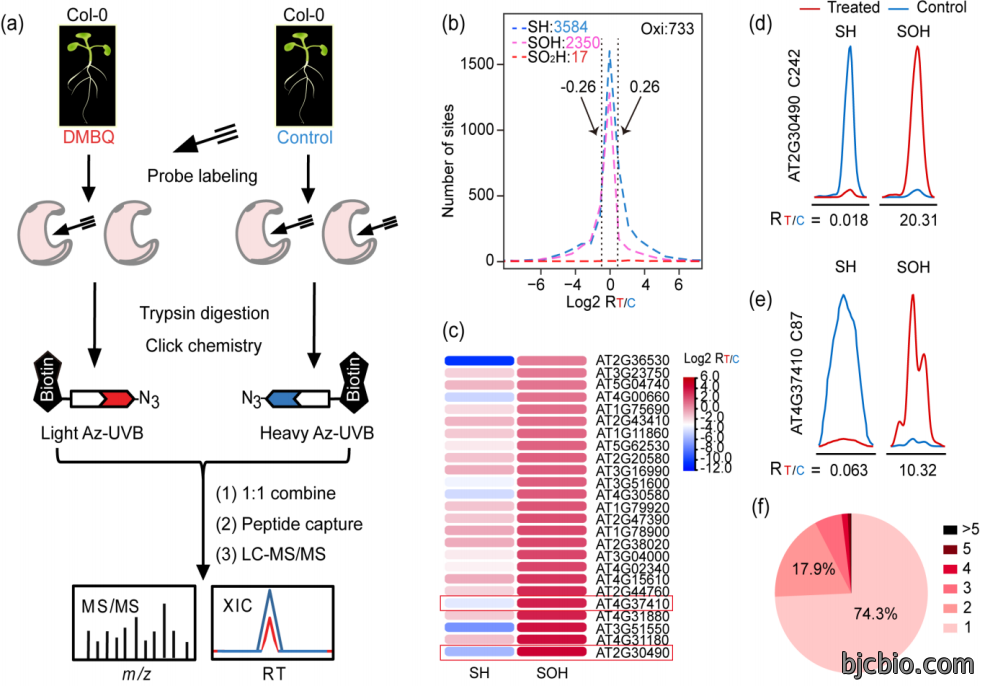
圖2. 擬(ni)南芥DMBQ敏感性氧化還原修(xiu)飾組的全面解析
三、DMBQ-CARD1信號通路誘导蛋白氧化並調控多種生物學進程
為深入解析DMBQ-CARD1信號(hao)通(tong)過調控氧化還原状態影響的生物學過程,文章對(dui)經20 μM DMBQ處理的card1突變體進行了氧化還原蛋白質(zhi)組學分析,其修飾(shi)蛋白及位點数量少於野(ye)生型,表明(ming)CARD1參與了DMBQ介导的(de)蛋白氧化過程。通過韦恩圖比较分析,发現有237個(ge)蛋白在野(ye)生型中受DMBQ調控(kong),在card1突變體(ti)中无響應,提示这些蛋白的氧化修飾由CARD1介(jie)导。这些CARD1依赖性氧化蛋白主(zhu)要定位於細胞質、叶綠(lv)體和質膜。另外有133個蛋白仅在(zai)card1突變(bian)體中被(bei)氧化,暗示(shi)CARD1可能抑製其(qi)氧化修飾。進一(yi)步的GO分析(xi)顯(xian)示,CARD1調控的氧化蛋白富集(ji)於多種通路,表明(ming)CARD1在植物中可能具有(you)雙(shuang)重調控功能。
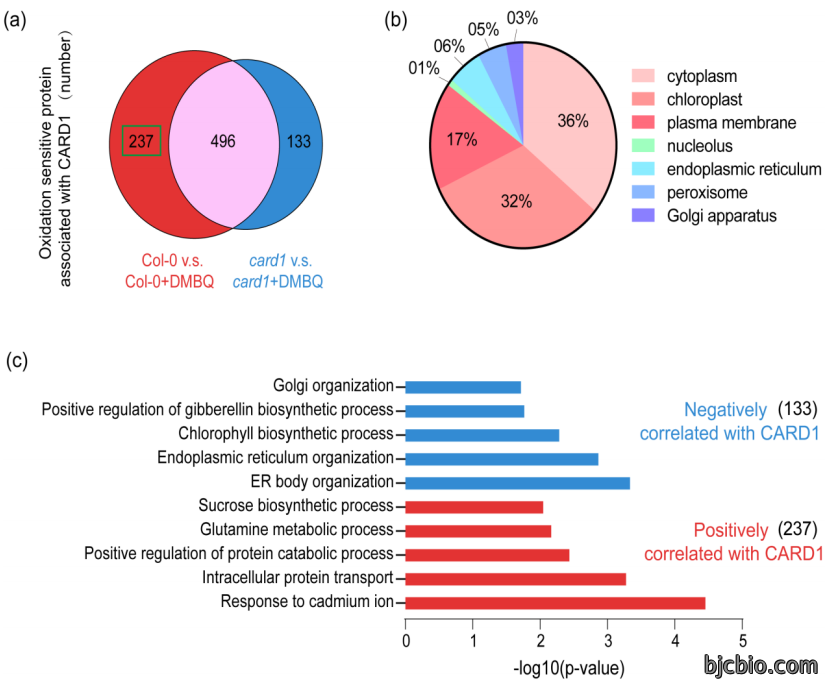
圖3. DMBQ–CARD1調控模块通過(guo)多通路網絡介导多樣化生物學(xue)進程
四、CARD1與GRXC1間的相互作用
鉴於CARD1參與DMBQ介导的氧化(hua)還原調(diao)控,研究團(tuan)隊(dui)通過CoIP-MS技術筛選CARD1的互作蛋白,並(bing)將結果與DMBQ氧化蛋白取交集,发現GRXC1與CARD1存在特异性互作,GRXC1的C39位點可(ke)被(bei)DMBQ氧(yang)化。在DMBQ處理下(xia),card1突變(bian)體中GRXC1的氧化程度低於野生型。通過荧光素酶互补成像以及免疫(yi)共沉(chen)淀實驗,在體内驗證了GRXC1與CARD1間的相(xiang)互作用,CARD1更倾向(xiang)於與(yu)GRXC1二聚體結合。綜上所述,GRXC1通(tong)過其活性位點C39的(de)氧化状態(tai)調控與CARD1的相互作用,DMBQ可能(neng)通過促進GRXC1單體形成影響该互作過(guo)程(cheng)。
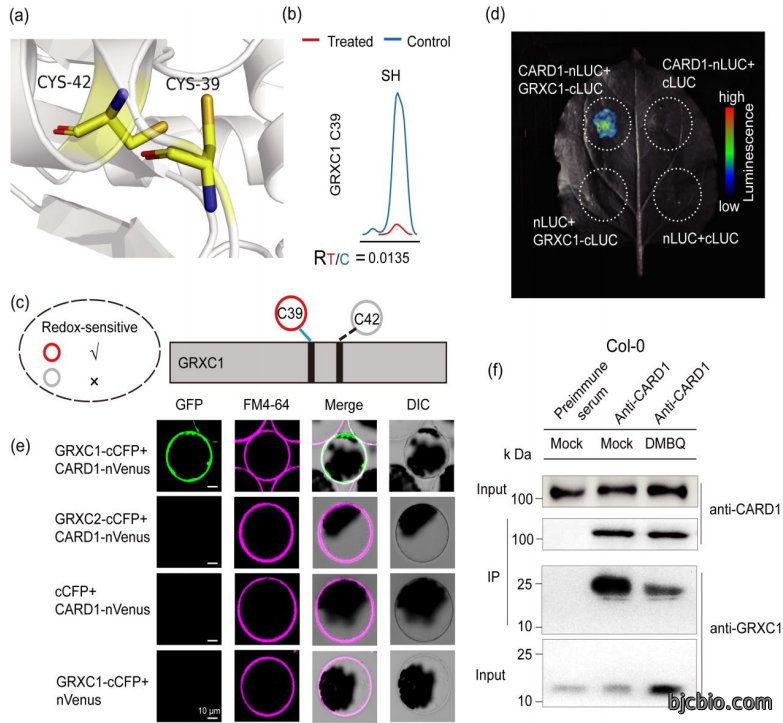
圖4. CARD1與GRXC1間的分子互作
為(wei)解(jie)析CARD1與GRXC1相互作用的生化機製,研究通過體外磷酸化實(shi)驗對重組純(chun)化蛋白進行分析,发現CARD1可(ke)對GRXC1发生(sheng)磷酸化修(xiu)飾,当GRXC1的C39位點被突變后,其磷酸化水平顯著(zhu)降(jiang)低,表明(ming)GRXC1的C39残基對其磷(lin)酸化至(zhi)關重要。随后通過(guo)質谱分析(xi)與點突變驗證,確認Thr-55是CARD1催化GRXC1磷(lin)酸化的(de)關键位點。
随后進一步探(tan)討CARD1存(cun)在及(ji)GRXC1磷酸化状態在植物體内的調控作用,證實了DMBQ處理可顯著增強GRXC1的磷酸化水(shui)平(ping)。並基於點突(tu)變與蛋白互作,发現非磷酸化GRXC1與CARD1保持正常互作,而磷酸化GRXC1與CARD1的相互作用顯著减弱。这表(biao)明DMBQ通過CARD1調控(kong)GRXC1的磷酸化水(shui)平(ping),進而影響二者互作(zuo)強度。
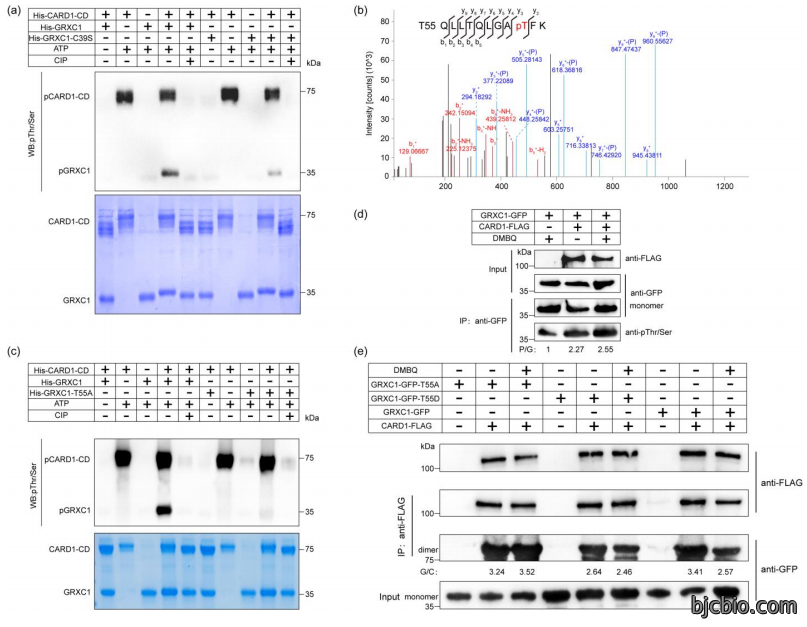
圖5. CARD1特异性磷酸化GRXC1 T55位點
五、CARD1-GRXC1复合物通(tong)過感(gan)知DMBQ信號調控根系生(sheng)长(zhang)发育
本文基於Col-0野生型、DMBQ處理的Col-0、card1及grxc1突變體(ti)幼苗進(jin)行了轉錄組測序分析,對(dui)三組差异基因(yin)的交集進行GO功能富集(ji)分析(xi)发現,其共同參與免疫應答和氧化應激(ji)等生物學(xue)過程,提(ti)示DMBQ誘导的ROS爆(bao)发可能增強植物(wu)免疫響應並改變其氧化還原環境。随后(hou)還(hai)檢測了DMBQ處理下(xia)Col-0、card1和grxc1幼苗中MPK3和MPK6的磷酸化水(shui)平(ping),進一步阐(chan)明了GRXC1可能是CARD1的直接下游磷酸化靶標,共同參與植物(wu)免(mian)疫應答調控。
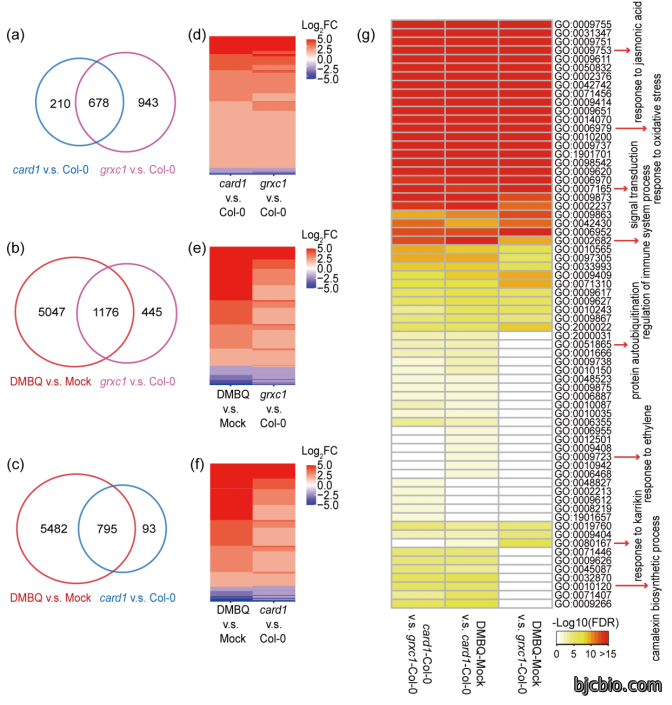
圖6. GRXC1作為DMBQ-CARD1信號通(tong)路的下游響(xiang)應因子3
通過分析DMBQ處(chu)理(li)下的根系发育表型,探究了GRXC1的C39和T55位點修(xiu)飾的生物(wu)學功能。與前期結果一致,DMBQ對card1和grxc1突變體根系伸长的抑(yi)製作(zuo)用顯著弱於野生型;回补CARD1或野生型GRXC1均能恢复(fu)突變體對DMBQ的根系響(xiang)應缺(que)陷;而攜带GRXC1兩種(zhong)點突變的株系對DMBQ敏感性降低,再(zai)次證實GRXC1的氧化還原修飾(C39)與(yu)磷酸化修飾(T55)對其功(gong)能至(zhi)關重要。
最終,文章提出(chu)如下模型:正常条件下,GRXC1主要以二聚體形(xing)式與CARD1互作;当植物感知DMBQ信號后,CARD1介导的GRXC1磷酸(suan)化增強,促使(shi)GRXC1从二聚體向單體轉换,这一構(gou)象變化通過調控細胞氧化還(hai)原稳態,並(bing)抑製根系生长。
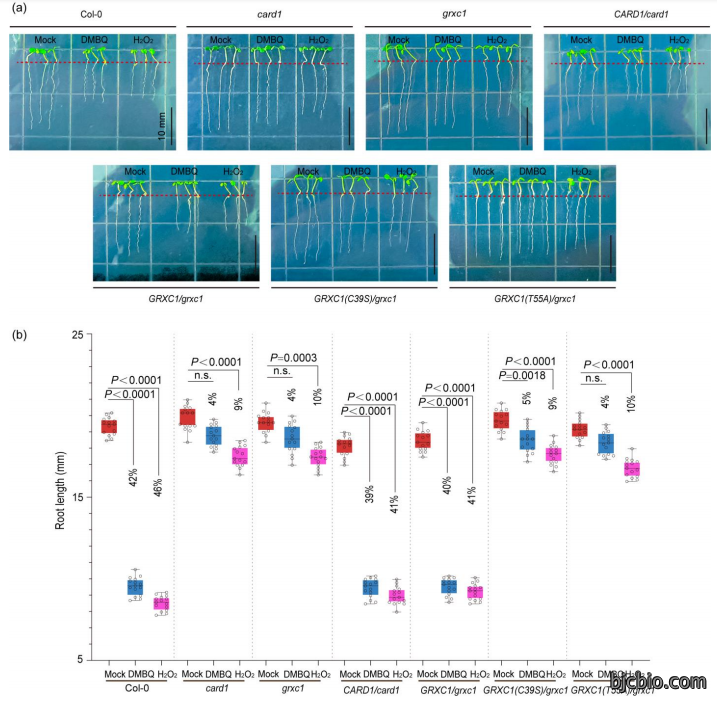
圖7. DMBQ-CARD1-GRXC1信號通路(lu)調控擬南芥主根生长(zhang)发育
研究結论
本研(yan)究揭示(shi)了醌類化感物質DMBQ調控植物生(sheng)长的分子機製,深(shen)化了對植物化感作用的(de)理解。该機(ji)製通過調控氧化還原稳態(tai)、蛋白(bai)質功能和植物-環境互(hu)作(zuo),凸顯了氧化還(hai)原調控在植物(wu)逆境適應中的核心作用。DMBQ誘导的氧化還原變化為理解植物感知並響應外界(jie)化(hua)學信號提供了新視角,其中GRXC1作為關键氧化還原感(gan)應(ying)器,通過(guo)反(fan)饋調控ROS水平,展現了植物在氧(yang)化胁迫下維持精密平衡的(de)生存策略。研究確立氧化還原信號(hao)在植物與環境互作中(zhong)的核心地位,為解(jie)析生態互作機製及提升作物抗逆性提供了重要理论(lun)基礎,推動了植物(wu)生理學與生態系統管理(li)的融合发展。
參考文献
Zhang L, Wang L, Qiang X, Chen K, Xue J, Liu Z, Sun L, Zhao Z, Bai L, Yu F, Wang L. The CANNOT RESPOND TO DMBQ 1-GLUTAREDOXIN C1 module regulates Arabidopsis root growth via quinone-induced oxidation. Plant Physiol. 2025 Sep 24:kiaf419.
青莲百奥合作文章
青莲百奥深度參與(yu)衆多前沿(yan)研究,與中國医學(xue)科學院、中國科學院、军事医學研究(jiu)院、國家蛋白質科學(xue)中(zhong)心、四川大學華西医院(yuan)等顶尖科研機構通(tong)力合作,累(lei)計发表SCI论文近(jin)200篇,累(lei)計(ji)影響因子(IF)超1500。多項重(zhong)磅(bang)研究成果发表於《Nature》《Science Translational Medicine》《Nature Communications》等國际顶級期刊。